「果蝇大脑学会玩《毁灭战士》」这类消息每隔一阵就会出现一次。点进去看到的画面通常是一只虚拟果蝇在 3D 场景里移动,标题暗示某个真实的大脑正在里面拿主意。
真正跑在那个场景里的东西值得拆开看。它由三部分拼成:用电镜测出来的接线图、一套只有几个公式的神经元动力学、以及把世界翻译成神经元语言再翻译回来的两段工程代码。第三部分承担的工作,比大多数人以为的多得多。
Konrad Kokosa 在原文里把这三层逐条摊开,同时做了一件更硬的事:用纯 C# 写了一个推理引擎 dotFly,把完整的雄性果蝇中枢神经系统放进 Godot 的游戏循环,在笔记本上实时运行。这篇按「模型是什么 / 演示在做什么 / 工程怎么做的 / 边界在哪」重新组织,并补齐原文点到为止的几处计算和版本信息。
演示里跑的其实是三层东西
理解后面所有内容只需要三个词:
- 连接组(connectome):重建出来的接线图,记录哪个神经元连到哪个、中间有几个突触接触点、以及预测的神经递质类型。它是一张图,本身不做任何计算。
- 神经模型(neural model):让这张图动起来的方程。图不会自己放电,是方程在放电。
- 具身接口(embodiment):模型与身体、游戏、世界之间的那段工程代码。
互联网下载到的是第一项。加上动力学和接口之后才有画面。没有人下载到一只冻结的活果蝇可执行文件。
接线图是怎么来的,以及它不是什么
把整件事压缩成「Google 在九月绘制了果蝇大脑」会丢掉十几年工作:
- 2018,Zheng 等发表成年雌蝇大脑第一份完整电镜体数据(FAFB),约 100 TB 切片图像;
- 2024,FlyWire 联盟完成这份数据的全脑重建,约 14 万神经元、5,000 万突触(Dorkenwald 等);
- 2024,Shiu 等在 Nature 发表这套全脑的第一个计算模型,并用真实实验验证——这是现在所有演示都在跑的那套动力学;
- 2025–2026,MaleCNS:一只五日龄成年雄蝇(标本 Z0720-07m),脑、颈、腹神经索一起解剖。
MaleCNS 的成像流程本身值得一提。标本用醛类固定、重金属染色、树脂包埋,热刀切成 66 块约 20 µm 厚的板,再用增强型聚焦离子束 SEM 以 8×8×8 nm 分辨率成像——镓离子束削掉薄薄一层,SEM 拍下新露出的面,重复。七台定制仪器,约 160 teravoxel 图像,成像耗时约 13 个月。之后是 Google 的 flood-filling 网络做神经元分割,自动检测器找突触,ResNet50 从电镜邻域判断神经递质,29 位专家校对员投入约 44 人年做修正和注释。
论文报告的规模是 166,700 个神经元、11,710 个细胞类型、约 2,560 万条有向边、1.24 亿个突触接触点。2026 年 9 月 3 日发表在 Cell,v1.0 数据 6 月就已放出,数据许可 CC BY 4.0。dotFly 从同一份发布数据建的 checkpoint 保留 2,490 万条边——差值是丢掉了递质不明确和组胺能的边,把它们当作空操作。
有一件事容易被跳过:连接组是一张死脑切片、重金属染色之后的照片。 它不是 fMRI,也不是活体电极记录。它不测膜电位或任何电活动,不测突触的功能强度(只数接触点),不测激素,也不包含这只果蝇死前学到、记住或感受到的任何东西。它是一张非常好的接线图,外加每个神经元一个预测出来的递质标签。
那模型怎么知道眼睛在哪里、腿在哪里?靠一个世纪的果蝇遗传学和神经解剖学。每个神经元都带注释——细胞类型(LC4、T4a、MN9、DNp04……)、类别、左右侧——由校对员根据形态、位置和连接性判定,并与文献对齐。所以文献里已知的事实可以直接拿来当输入输出的定义:LC4 对逼近的物体(looming)有反应,T4a–d 对应四个方向的运动,ORN_DM1 对应一种气味,糖感受神经元(GRN)对应糖,MN9 是伸出喙的 motor neuron,DNp04 和 Giant Fiber 是把指令送向腹神经索的逃逸下行神经元。
按这个约定,感觉神经元就是输入,下行神经元和 motor neuron 就是输出。约 1,300 个下行神经元把脑的指令传到神经索,motor neuron 驱动肌肉——这不是模型的假设,是解剖结构。
让它放电的那套方程
Shiu 等的做法是「用能跑起来的最简单的东西」:每个神经元是一个漏积分放电(leaky integrate-and-fire,LIF)点神经元。丢掉形状、树突和离子通道,只剩一个数——膜电位。输入的脉冲把它推高或压低,它按时间常数漏回静息值,越过阈值就发放一个脉冲并复位。
论文里的参数是:
| 参数 | 值 |
|---|---|
| 静息电位 V_rest | −52 mV |
| 复位电位 V_reset | −52 mV |
| 发放阈值 V_th | −45 mV |
| 膜时间常数 T = R_mbr × C_mbr | 10 kΩ·cm² × 2 µF·cm⁻² = 20 ms |
| 突触电流衰减 τ | 5 ms |
| 突触延迟 | 1.8 ms |
| 不应期 | 2.2 ms |
连接组进入方程的地方只有一处,就是每条边的权重:
w_ij = sign(NT_i) · n_ij · W_synn_ij 是两个神经元之间的突触接触点数,显微镜数出来的。W_syn 对整个网络是同一个值:0.275 mV 每接触点。这是整个模型里唯一的自由参数——Shiu 等拿「刺激糖感受神经元,吐喙反射的强度要合理」把它标定出来,之后就固定不动,其余常数都来自此前的电生理文献。
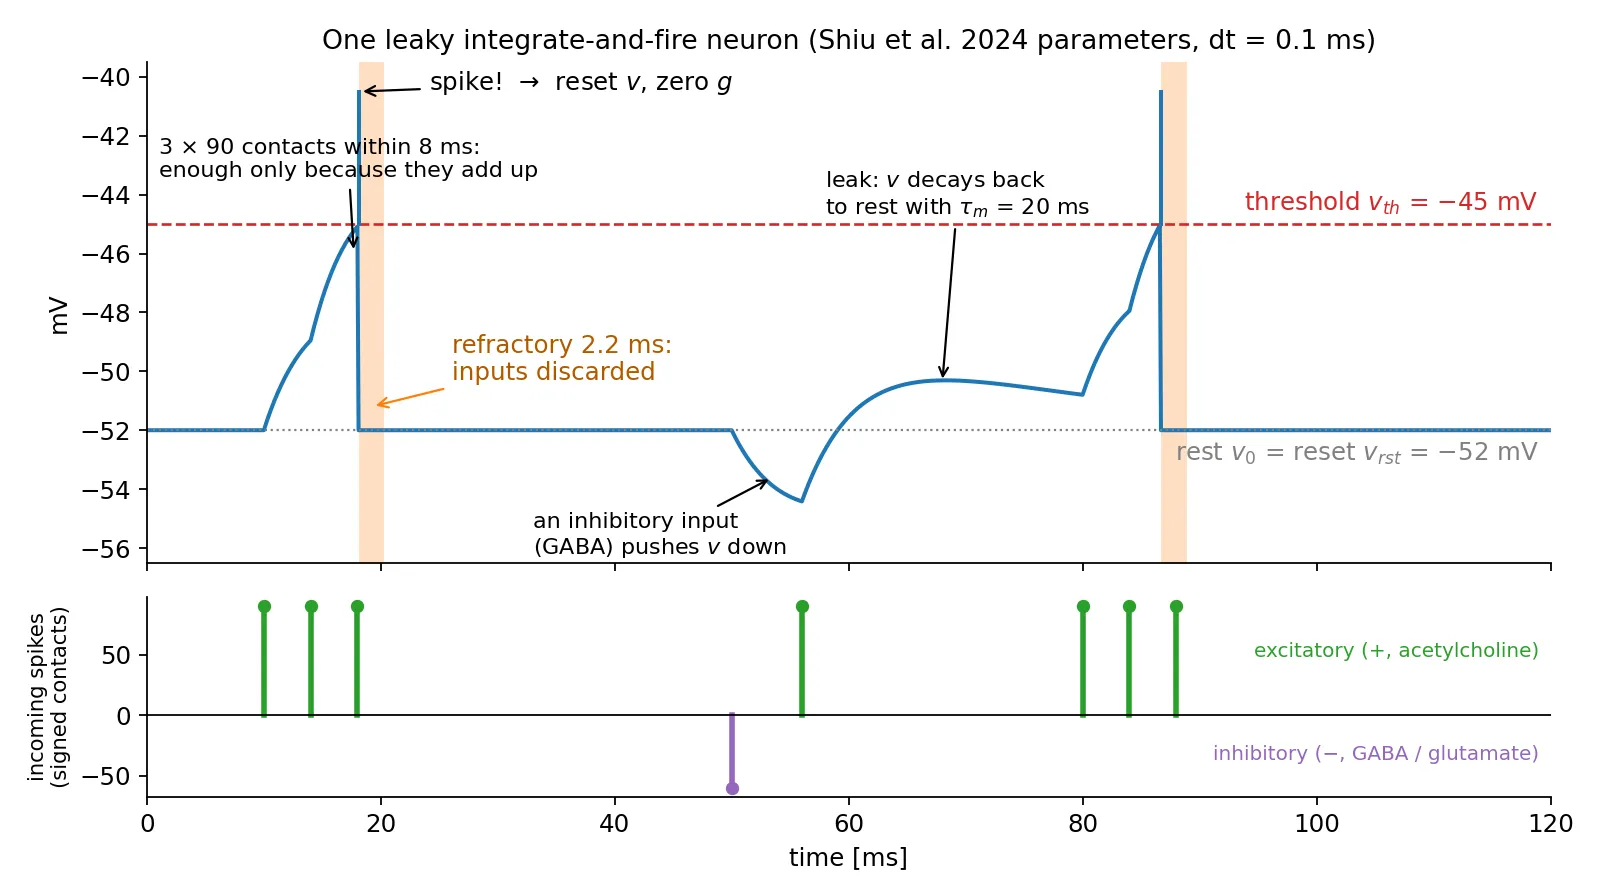
上图解释了为什么发放需要汇聚。静息 −52 mV 到阈值 −45 mV 只差 7 mV,但突触电流以 5 ms 衰减,而膜时间常数是 20 ms,单个脉冲推上去的电位峰值会被时间常数大幅削减。一个有 90 个接触点的输入神经元单独放一次脉冲还不够;三个脉冲在 8 ms 内叠起来才越线。反过来说,要靠单个输入神经元的一次脉冲引发发放,大约需要 162 个接触点。原文给出的正是这两个数:3 × 90,以及 162。
sign(NT_i) 这一步对没有生物背景的读者需要单独说明。神经元通过在突触上释放化学物质和下一个神经元说话,每个神经元基本只用一种;有的物质兴奋下一个神经元,有的抑制它。连接组同样没测这个,是分类器从电镜图像里预测的。模型把整套化学压缩成一个 bit:乙酰胆碱是主要的兴奋性递质,记 +1;GABA 和谷氨酸抑制,记 −1;多巴胺、章鱼胺、5-羟色胺在真实神经系统里是调质——它们改变其他突触的行为、携带奖赏和唤醒一类的信息,而 LIF 没有地方表达这件事,Shiu 等干脆把它们算作兴奋性 +1。这是建模约定,不是生理学:给多巴胺神经元记 +1 并不等于实现了奖赏或学习。
模型的效果是:Shiu 等用它生成「激活这些神经元,那些应该放电」的预测,再拿光遗传学激活和钙成像在真实果蝇上验证。论文的原话是,在 164 条能够实测的预测中 91% 与实验结果一致;扣掉 split-GAL4 光遗传实验那一批(其中绝大多数细胞类型不会引起 MN9 激活)之后是 84%。这两个数字说的是这 164 条预测,不是整只果蝇的行为。
还有一条是整个讨论的地基:权重是固定的,不训练。 没有人为了让网络玩马里奥去拟合 2,490 万个权重,也不应该这么做——一旦开始用游戏分数拟合它们,它就不再是「果蝇的大脑」,只是一个恰好从果蝇形状的图出发的神经网络。原始模型里没有任何可塑性规则。
所以玩法始终是同一件事:给输入,看输出。 用 150 Hz 的泊松脉冲驱动糖感受神经元,看剩下十几万个神经元里谁开始放电;沉默一个神经元,看什么变了。这也正是它有价值的原因——一个可编程、可检验的神经回路模型,让假设变成一次运行。
那些「果蝇玩游戏」的演示分别在做什么
每一个这类演示都是同一套三段式,差别全在两头:
| 层 | 性质 | 谁决定 |
|---|---|---|
| 输入神经元 | 测量到的身份 | 连接组 + 细胞类型注释 |
| 连接组 + LIF 动力学 | 测量到的连线,一个校准参数 | Shiu et al. 2024 |
| 读数神经元 | 测量到的身份 | 连接组 + 细胞类型注释 |
| 编码器(世界 → 输入神经元的发放率) | 工程 | 每个演示各写各的 |
| 解码器(读数 → 按钮或身体动作) | 工程,固定或训练 | 每个演示各写各的 |
接线和动力学是共享的,适配器才是各家分道扬镳的地方,也是表面「智能」的主要来源。下面三个例子的细节来自原文作者的逐个核对,这里保留结论。
Xenova 的浏览器演示把完整的 166,700 神经元 MaleCNS LIF 放在 WebGPU 上跑,驱动一个 3D 果蝇身体,可以手动给神经元涂刺激。它的预设是「walk 刺激两侧 LC9」「turn left 刺激左侧 LC9 加左侧 DNa02」「fly 刺激两侧 LC4」。输出侧读一小批下行神经元——DNp09/DNg100/DNg97 对应前进速度,DNa02/DNa11/DNg13 的左右差对应转向,MDN(俗称 moonwalker,负责倒退的神经元)对应跳跃,DNp01(Giant Fiber)对应逃逸飞行——每个都配一个手选的增益。有一点需要知道:「转向」预设会直接刺激输出神经元 DNa02,而不只是视觉输入,作者说明了原因(只给视觉输入,DNa02 激活太弱),但这也意味着即使把脑内所有连接都剪断,果蝇仍然会转。
Fly Dino 走的是完全不同的路线:不用整个脑,只用 80 个神经元的子回路——32 个视觉探测神经元加 16 个下行神经元,挑选标准是它们在连接组里构成从「视觉事件」到「运动指令」连接最强的通路。它用 tanh 分级速率模型而不是脉冲 LIF,输入不是像素而是八个游戏特征。解码器是一张 243 个参数的小网络,通过 15,680 局游戏的试错训练出来,果蝇回路本身从头到尾没有变过。这就是 reservoir computing:把脑当作一个固定的、复杂的变换,只拟合最后那层「哪个动作」的映射。它漂亮的地方在于对照实验——把果蝇回路关掉、只留训练好的适配器,得分从 2,886 掉到 41。回路确实在做事。
Fly64 / fly-games 这类「果蝇玩马里奥」 用完整 MaleCNS LIF,但以 20 ms 的粗时间片推进,游戏帧被转成视觉探测器的特征(LC4 当作威胁、LPLC2 当作逼近物、LC10a 当作要追的目标),输出侧是十几个下行神经元组到按键的映射:DNa02 左右控制方向,DNp09 控制前进。Fly64 里这张表是手写的(左侧 DNa02 放电比右侧多就按左),fly-games 里用一小段线性回归从录制的人类操作里拟合。还是 reservoir computing。它在没见过的录制片段上能 90% 猜对按键,但实时玩的时候很快就死——因为实况会漂移到录制数据之外,马里奥一头撞在墙上不动了。
这些都不是批评,都是诚实的实验。要点是:适配器的权重极大,而一个会动的身体什么都证明不了——除非你把对照也跑了,把脑内连接关掉、把输入关掉,看还剩什么。
dotFly:一个 .NET 推理引擎
dotFly 首先是一个库,不是一个演示:一个用 .NET 实现的果蝇连接组脉冲模型推理引擎,Godot、控制台程序、测试和基准测试都以进程内方式链接它。它把 MaleCNS 和 FlyWire 发布数据建成内存映射的 checkpoint,在上面跑 Shiu 等的模型——精确(float64 后端与 Brian2 逐脉冲一致)而且快(float32 SIMD 后端在笔记本上实时跑完整 MaleCNS)——并对外暴露「刺激进、脉冲和速率出」、录制与回放,以及那些因果开关。
它和作者上一个项目 dotLLM 在约定上一脉相承:内存映射的模型文件、非托管状态、SIMD 内核、热路径零分配。每个项目是一个 NuGet 包:
src/DotFly.Core        .dfb checkpoint 读取(mmap)、图表、NeuronModel、RNG、IBackend
src/DotFly.Data        MaleCNS / FlyWire 发布数据读取
src/DotFly.Cpu         SIMD LIF 内核、计算线程池
src/DotFly.Engine      Simulation、输入/输出端口、实时驱动、录制器、适配器
src/DotFly.Adapters.*  ONNX Runtime / ML.NET 读数适配器
src/DotFly.Cli         dotfly build | inspect | run | bench | explore
有趣的是,把「刺激糖感受神经元、读吐喙 motor neuron」这个论文实验写成代码只需要十行左右:
// 神经元用连接组发布数据里的精确 64 位 ID 寻址
using Brain brain = Brain.Open(".data/shiu2024/flywire-v630.dfb");
using Simulation sim = brain.CreateSimulation(new SimulationOptions { Seed = 1 });

NeuronSet sugar = brain.ByBodyIds("sugar_GRN_R", sugarGrnIds);   // Shiu 等的 21 个糖 GRN
sim.Input(sugar, InputKind.PoissonToV).Fill(150f);               // 每个 150 Hz 泊松驱动
OutputPort mn9 = sim.Output(brain.ByBodyId(Mn9), OutputKind.Rate(50.Ms()));

sim.Run(1.Seconds());                                            // 神经时间,不是墙钟
API 表面上就这几行,真正落地的是检查点格式、内核和线程模型。整套设计里起作用的是几条决定:checkpoint 用内存映射文件(.dfb,作者称之为 dotFly 的 GGUF),图用 CSR 存放——rowPtr[N+1]、col[E]、w[E],其中权重是 int16 的带符号接触点数;状态用非托管的、64 字节对齐的 SoA 布局,整个 MaleCNS 约 2 MB,正好装进 L2;LIF 内核用 Vector256<float>,脉冲索引用 TrailingZeroCount 压缩。
房间演示:把「测量」和「工程」贴在屏幕上
房间演示是一只果蝇在阳光照进的客厅里,顺着气味云找到糖罐、落上去、伸出喙。它是用来看「一个非常薄的具身接口,配上一只自带感官的果蝇,还需要多少适配器」而搭的。
感知到输入这一段是固定的编码器:两只复眼各渲染一张 32×32 的亮度图,每只眼睛的暗区比例及其变化率变成 LC4(逼近)的发放率,水平与垂直图像位移变成 T4a–d(光流)的速率,两根触角上的气味浓度变成 ORN_DM1,风向变成 JO-C/E(Johnston 器官),落上去之后的糖接触驱动足部和口器的味觉神经元。一共 7,524 个输入神经元。
中间的连接组是测量出来的:166,700 个神经元按真实胞体位置绘制,被真实脉冲点亮。
读数侧只读那些用 CLI 在 checkpoint 里确认存在的回路(dotfly inspect --upstream-of、dotfly run --stimulate),13 组:
- LC4 → DNp04 左右 / Giant Fiber:逃逸
- T4a → HS、T4b → H2、T4c → VS:光流
- ORN_DM1 → DM1 投射神经元:气味量
- JO-C/E → AMMC012:风向
- GRN → MN9:进食
解码器是手写的,而且规则直接印在屏幕上,紧挨着它消费的那些读数:
| 脑信号 | 规则 | 行为 |
|---|---|---|
| DNp04 左右差 | yaw += 1.2 · (DNp04_L − DNp04_R) | 从逼近侧转开 |
| HS + H2 左右差 | yaw += 0.2 · ((HS_R + H2_L) − (HS_L + H2_R)) | 反向补偿旋转 |
| HS 左右差 | yaw −= 0.3 · (HS_R − HS_L) | 在两墙之间居中 |
| DNp01(Giant Fiber) | speed = 120 + DNp01 体长/秒 | 巡航,逃逸时爆发 |
| DM1_lPN(气味量) | > 110 Hz 且上升 → 前进;下降 → 翻滚;丢失 → 掉头再搜索;> 270 Hz → 下降并着陆 | 气味搜索 |
| AMMC012 左右差(风) | 前进时 yaw −= 0.6 · (wind_L − wind_R) | 逆风飞 |
| MN9(0.3 s 平滑) | > 15 Hz → 进食;停止 → 起飞 | 进食 |
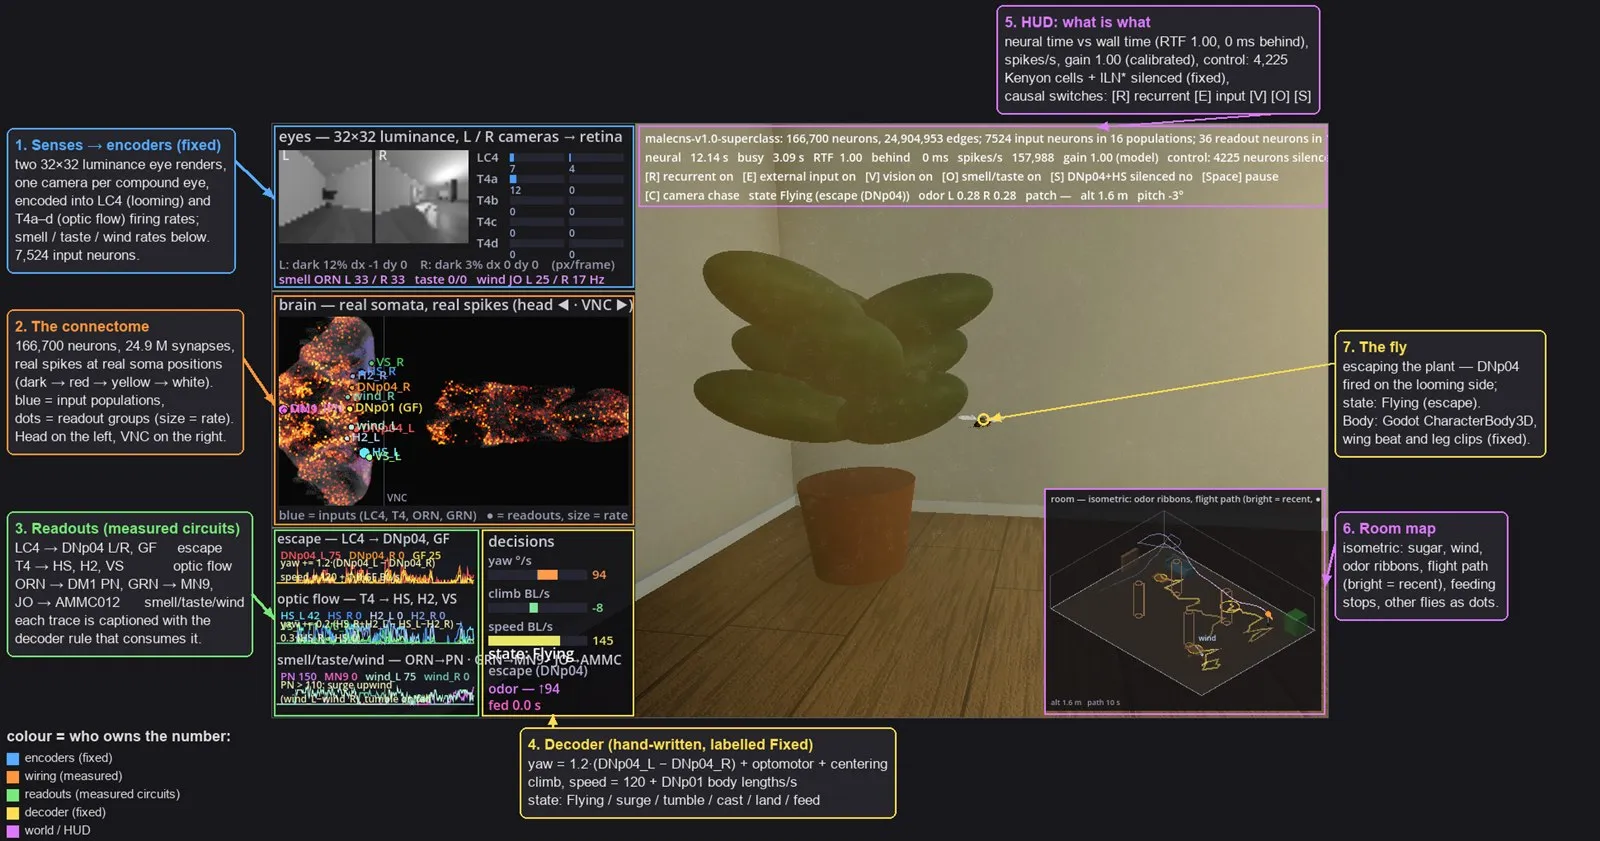
一个有意思的发现写在表格下面:气味的方向根本读不出来。 两个 DM1 候选投射神经元对刺激哪一根触角反应一样,所以搜索行为只能靠适配器里的逻辑来补——气味变浓就继续前进,变淡就掉头,风信号来自脑本身。
塞进游戏循环要付的性能账
整个 MaleCNS 在作者的 8 核笔记本(Ryzen 7 5800HS,AVX2)上的实测:
| 场景 | 神经元 | 实时倍率 | 步/秒 |
|---|---|---|---|
| FlyWire v630,21 个糖 GRN @ 150 Hz(Shiu 实验) | 127,400 | 19.6× | 196,000 |
| MaleCNS v1.0,无输入 | 166,700 | 14.5× | 145,000 |
| MaleCNS v1.0,1,684 个 T4a @ 150 Hz(0.5 M 脉冲/秒) | 166,700 | 6.2× | 62,000 |
作者还顺手把同一份工作放到别的实现上跑了一遍。用同一个 MaleCNS 图、同样的刺激,脉冲计数在各实现之间只差随机数种子(T4a 场景都是 534–539 k),所以他比的是同样的计算量:
| 实现 | 场景 | 步/秒 | 实时倍率 |
|---|---|---|---|
| Shiu 等的论文,Brian2(论文报告值,每 CPU 线程) | v630,糖 GRN @ 150 Hz | ~33 | 0.003× |
| Brian2 2.9,numpy 后端,Python(同机) | v630,糖 GRN @ 150 Hz | ~400 | 0.04× |
| Xenova BrainCPU,JavaScript 于 Chrome worker,1 线程 | MaleCNS,1,684 T4a @ 150 Hz | 628 | 0.06× |
| Xenova BrainCPU,JavaScript 于 Node 24,1 线程 | MaleCNS,1,684 T4a @ 150 Hz | 851 | 0.09× |
| Xenova BrainGPU,WebGPU 于集显 Radeon(Vega 8) | MaleCNS,1,684 T4a @ 150 Hz | 2,409 | 0.24× |
| Xenova BrainGPU,WebGPU 于 RTX 3050 Ti Laptop | MaleCNS,1,684 T4a @ 150 Hz | 5,383 | 0.54× |
| dotFly,C#,1 线程 | MaleCNS,1,684 T4a @ 150 Hz | 10,740 | 1.07× |
| dotFly,C#,8 线程 | MaleCNS,1,684 T4a @ 150 Hz | 43,656 | 4.37× |
| dotFly,C#,8 线程 | v630,糖 GRN @ 150 Hz | 196,000 | 19.6× |
同线程数下,C# 比 JavaScript 参考实现快约 11 倍。原因不是 JavaScript 慢(V8 处理类型化数组很好),而是 JIT 不会免费给你的东西:Vector256 一次处理八个神经元、状态布局刚好装进 L2、散布写(scatter)没有边界检查、投递循环只访问自己那份常驻缓存里的 g 切片。
这里面有一个纯粹 .NET 侧的坑值得单独记:每个逐步骤方法都要加 [MethodImpl(MethodImplOptions.AggressiveOptimization)],这是最大的一处意外。 不加的话,分层 JIT 会把内核和批处理循环在一次短运行的大部分时间里留在 tier-0/OSR,每步 21 µs 而不是 6 µs。同类坑还有 Godot:Debug 构建会把被引用的项目一起拖进 Debug,必须用 SetConfiguration="Configuration=Release" 钉住库引用,否则内核慢 25 倍。
上表不包含以 20 ms 步长推进的那些演示。步数少 200 倍,它们便宜是构造使然,代价是那已经不是 Shiu 模型了。
还挡在前面的两个限制
第一,视觉的边界放错了位置。 今天 C# 这边直接计算「视叶应该算出什么」:视网膜编码器把图像位移和扩张直接变成 T4 和 LC4 的信号,跳过了逼近通路的前四个环节。真实果蝇的复眼由约 800 个小眼组成,后面跟着一整块视叶——占了全脑神经元相当大的比例——它存在的意义正是从感光细胞的信号里算出运动和逼近。下一个里程碑是把光直接喂进感光细胞,看中间的连线能不能自己算出运动和逼近:如果能,编码器就缩成「每只眼睛的亮度」;如果不行,退路是接一个 Flyvis 式训练出来的视叶。
第二,果蝇自己的导航回路是静默的,这是更大的那个。 演示里「往哪走」——逆风前进、翻滚、搜索、着陆——是作者的解码器决定的。真实果蝇在自己的脑里做这件事,而且那个回路就写在连线里:记录朝向、与风和气味结合、驱动转向神经元 DNa02 左右两侧的那些神经元。把风和气味输入打开,它们一个都不放电:DNa02 只有 0–8 Hz,DNa03 ≤ 10 Hz,EPG 3–13 Hz 且左右对称,PFL3 / hΔC ≈ 0。原因是这个回路是递归的——它自己反馈给自己,活动只能靠活跃神经元一边兴奋邻居一边抑制其余部分来维持。当前的 Shiu 模型表达不了这类动力学。
还有一处作者主动标在 HUD 上的权宜之计:增益为 1.0 时会有失控的吸引子。一侧 LC4 输入几个赫兹就会点燃视叶回路(约 450 k 脉冲/秒,而且停不下来),任何 ORN 输入都会点燃触角叶—蘑菇体回路。演示的办法是把 4,225 个 Kenyon 细胞和 lLN* 局部神经元静默掉,之后所有用到的读数都是分级响应、输入停止一秒内回落。均匀的 LIF 缺少这些群体在活体里的稀疏化机制(APL 抑制、Kenyon 细胞的高阈值、局部神经元的增益控制)。这件事被印在屏幕上,而不是藏起来。
自己动手
dotFly 是 GPL-3.0,连接组数据是 CC BY 4.0 且需要单独下载。跑起来需要 .NET 11 SDK(RC1 或更高),只有两个 Godot 演示需要 Godot 4.7 .NET 版;磁盘上 FlyWire v630 约 300 MB,MaleCNS v1.0 加 checkpoint 约 3 GB。库、CLI 和糖实验可以只用 FlyWire 数据,房间演示才需要 MaleCNS。
最短路径是先跑论文里那个糖实验:
git clone https://github.com/kkokosa/dotFly
cd dotFly
dotnet build -c Release
dotnet test  -c Release        # 94 个单元与集成测试,不需要数据

# 取 FlyWire v630(约 90 MB),建 checkpoint
git clone --depth 1 https://github.com/philshiu/Drosophila_brain_model .data/shiu2024
dotnet run --project src/DotFly.Cli -c Release -- build flywire \
  .data/shiu2024/2023_03_23_completeness_630_final.csv \
  .data/shiu2024/2023_03_23_connectivity_630_final.parquet -m 630

# 30 次糖 → MN9 试验,约 2 秒
dotnet run --project samples/DotFly.Sample.SugarExperiment -c Release
验收方式很直接:它会打印活跃神经元数、MN9 的平均发放率,并与论文发布的 sugarR.parquet 对照——活跃神经元 448 vs 433(Jaccard 0.949)、逐神经元速率相关 0.9946、MN9 93.3 Hz vs 83.3 Hz。作者自己的结论是 Brian2 2.5.1 和 2.9 复现的是 dotFly 的结果而不是那份发布速率文件,剩下的差异属于发布文件。
想验证「给输入看输出」这条主线,可以用 CLI 做几个最小实验:
# 刺激左侧 71 个 LC4 神经元,看谁放电(逃逸通路会不会自己亮起来)
dotfly run <ckpt> --stimulate "type:LC4@L" --hz 120 --seconds 1

# 谁在驱动吐喙 motor neuron
dotfly inspect <ckpt> --upstream-of <MN9 id> --hops 2 --min-weight 5

# 刺激停止后读数会不会回到基线(失控吸引子)
dotfly run <ckpt> --stimulate "type:ORN_DM1" --hz 60 --seconds 3 --stim-seconds 1 \
  --silence "class:Kenyon_Cell;type:lLN*"
一个判断值得留在最后。这套东西的价值不在「我们能模拟大脑了」,而在两件分开的事:平台层面,.NET 可以在笔记本上实时跑完 166,700 个神经元、约 2,490 万个突触的脉冲网络,线程数变化不影响结果,且与科学参考实现一致——Vector256、NativeMemory、内存映射文件和手写线程池就够了;科学层面,连接组是一次壮观的测量,LIF 模型是一个壮观的起点,而今天所有让果蝇「玩游戏」的东西都是适配器,它们应该被显示在屏幕上,并且在一组对照实验里被关掉。
原文作者的邀请是:如果你是想从 C# 里戳一戳真实大脑的 .NET 开发者,或者是想要一个比参考实现快三个数量级的内循环的神经科学家,去刺激点什么,沉默点什么,然后告诉他什么在放电。
参考
如果这类「把科学模型和工程实现摆在一起看」的拆解对你有用,Aide Hub 会继续分享 .NET 工程实践、AI 助手和开发工具的整理,欢迎关注。
- dotFly - a fruit fly’s brain, simulated in C#(原文)
- dotFly 源码(GPL-3.0)
- dotFly 文档
- dotFly:Measured vs engineered 清单
- Shiu et al. 2024, A Drosophila computational brain model reveals sensorimotor processing(Nature 634: 210–219)
- Berg et al. 2026, Sexual dimorphism in the complete Drosophila male central nervous system connectome(Cell 189: 5504–5526)
- MaleCNS 项目页与数据下载(CC BY 4.0)
- FlyWire
- Xenova 的浏览器端果蝇仿真
- Fly Dino